深度解析医学证据,lxfs.net为你支撑决策
简明总结
本研究对34例泰国儿童肝母细胞瘤的化疗后肿瘤样本进行全外显子测序。每例平均检出3.6个体细胞突变及181.5个局灶性拷贝数改变,提示仅关注点突变可能不足以描述该队列的基因组特征。
FGD4缺失组的中位无病生存为14.9个月,未缺失组为96.9个月;中位总生存分别为48.8和96.9个月。ZNF429缺失亦与较短生存相关。这些小样本探索性结果提示拷贝数分析具有潜在风险评估价值,尚需独立肝母细胞瘤队列验证。
CTNNB1突变组总生存及无病生存呈改善趋势,但均无统计学显著性。所有样本均采自含铂化疗后,且无配对正常样本;外部表达分析采用肝母细胞瘤数据,而外部生存分析采用肝细胞癌数据,不能将两者混同。NRAS、CTNNB1相关药物线索主要来自其他癌种,尚不能直接用于肝母细胞瘤治疗决策。
摘要
背景与目的:肝母细胞瘤(HB)是一种罕见的儿童肝癌。完整切除和化疗是标准治疗,但发展中国家的许多患者就诊时肿瘤已无法切除,且对常规化疗反应不佳。识别HB的体细胞改变可能有助于开发治疗。
材料与方法:对34例HB患者样本进行外显子测序,识别体细胞突变和拷贝数变异(CNV),并评估其与包括生存在内的临床结局之间的关系。
结果:HB肿瘤表现为低突变负荷和较多CNV,每个肿瘤平均具有181.5个CNV,而体细胞突变仅为3.6个。CNV富集于参与转录、分化和发育的通路。最常见的改变为KMT2D(18%)、CTNNB1(12%)和MUC16(3%)错义突变。本队列中KMT2D突变比CTNNB1突变更常见。携带KMT2D或CTNNB1突变的患者总体上具有更好的总生存和更长的无病间期。ZNF429或FGD4缺失与本队列较短的生存相关。外部数据集验证证实,HB样本中FGD4表达显著下调,并与较差生存相关。
结论:本研究拓展了对HB患者体细胞改变的认识,为HB发生的分子机制提供见解,并强调CNV谱分析和FGD4缺失作为HB预后因素的潜力。
引言
肝母细胞瘤(HB)是儿童最常见的原发性肝癌,约占5岁以下儿童全部肝肿瘤的80%。尽管它是一种罕见的胚胎性恶性肿瘤,全球发病率为每百万儿童0.5~2.0例,但近几十年来其发病率持续上升,年增幅最高达2.7%。这一趋势在早产儿和极低出生体重儿中尤为明显,因为在肝脏发育关键阶段长时间接受氧疗、生长因子及代谢应激,可能使肝母细胞更易发生恶性转化。HB早期常无症状,因而经常延误,导致60%~70%的患者就诊时已为晚期,使临床管理面临挑战。诊断延迟、肿瘤快速生长及早期血管受累,使多数初诊病例无法立即接受根治性手术。因此,当前治疗依赖风险分层方案,将新辅助化疗与延迟手术相结合。顺铂和多柔比星等标准方案可使低至中危患者的无事件生存率超过85%。然而,高危人群的结局仍然不佳,尤其是存在转移、多灶病变或血管侵犯者,其5年总生存率降至60%~70%。
与其他儿童实体瘤相比,HB的分子特征研究揭示其基因组改变谱出乎意料地简单;全外显子和全基因组测序研究一致显示其突变负荷极低,每个肿瘤平均仅有2~5个体细胞突变。遗传改变稀少使HB区别于其他儿童癌症,也提示仅少数关键致癌事件可能就足以引起肝母细胞转化。Wnt/β-catenin信号通路是参与HB发生的主要分子通路,CTNNB1突变是最常见的遗传改变,在不同研究和人群中见于60%~90%的病例。这些突变通常影响CTNNB1第3外显子,靶向糖原合酶激酶-3β(GSK-3β)识别序列内的关键磷酸化位点(Ser33、Ser37、Thr41、Ser45),使β-catenin蛋白稳定并持续激活Wnt通路。除CTNNB1外,HB的分子多样性还涉及AXIN1、APC和TP53等其他癌症相关基因的改变,但发生频率较低,见于5%~15%的病例。值得注意的是,存在TP53突变时,其与更具侵袭性的疾病及更差临床结局相关,提示其作为预后生物标志物的潜力。近期大规模基因组研究还识别出反复出现的染色体改变,包括2q、8q及20号染色体增益,这些改变可能促进癌基因激活和肿瘤生长。
Bowen和Monga的实验证据表明,仅激活β-catenin不足以在小鼠模型中诱导HB形成,提示还需要额外致癌打击或特定发育背景。此外,高危HB化疗耐药的分子基础仍不清楚,阻碍了克服治疗失败策略的开发。识别可用于治疗反应预测、患者分层及预后评估的生物标志物,是该领域亟待满足的重要需求。
本研究的主要目的是描述泰国儿童肝母细胞瘤的体细胞改变谱,包括突变和拷贝数变异。次要探索性分析旨在评估基因组改变与临床特征之间的潜在关联,并识别候选生物标志物或治疗靶点。通过这一方法,我们希望提供特定人群的基因组见解,以加深认识并支持未来的肝母细胞瘤风险分层。这些发现最终可能推动精准医学策略的开发,改善儿童HB患者的临床结局并降低治疗相关毒性。
2| 材料与方法
| 2.1 样本收集
收集2004—2020年间在Songklanagarind医院接受过含铂化疗的34例经组织学确诊HB患者的肿瘤样本。这些病例均无对应的正常邻近组织或血液样本。每份肿瘤样本在手术切除后立即于液氮中速冻,并于−80 ℃保存于宋卡王子大学医学院转化医学研究中心(泰国宋卡)的生物样本库,直至分析。所有患者监护人在参与前均提供知情同意,允许收集临床资料、获取和保存生物样本、开展实验分析及发表相关研究结果。病历不完整,或缺少确定治疗前肿瘤范围(PRETEXT)和/或治疗后肿瘤范围(POSTTEXT)分期所需CT资料的患者被排除。所分析的临床资料,包括确诊年龄、性别、出生体重、血清甲胎蛋白(AFP)水平,以及初始肿瘤大小、PRETEXT和/或POSTTEXT分期等影像学参数,均收集自Songklanagarind医院电子病历。本研究获得宋卡王子大学医学院伦理委员会批准(REC 62-386-10-1)。
| 2.2 全外显子测序(WES)
采用Qiagen DNA Mini试剂盒(Qiagen,德国Hilden)提取DNA。采用NanoDrop 2000分光光度计(Thermo Scientific,美国特拉华州Wilmington)及琼脂糖凝胶电泳评估每份肿瘤标本DNA质量。采用Agilent SureSelect XT Human All Exon v5试剂盒(Agilent Technologies,美国加利福尼亚州Santa Clara)捕获人类外显子区域。随后,按照制造商说明,使用SureSelect XT Target Enrichment System for Illumina Paired-End Sequencing Library试剂盒(Agilent Technologies,美国加利福尼亚州Santa Clara)构建测序文库。文库在Illumina NovaSeq 6000平台(Illumina,美国加利福尼亚州San Diego)测序,生成150 bp双端读段,平均目标覆盖深度为100×。
使用Trimmomatic处理WES FASTQ文件,去除接头及低质量读段(质量评分低于15或读段长度小于36 bp)。仅将高质量读段用BWA-MEM(0.7.12版)默认设置比对至人类参考基因组(GRCh38)。生成的序列比对(SAM)文件转换为二进制比对(BAM)格式,并用SAMtools(1.17版)排序。随后对排序后的BAM文件重新分组,并使用Picard(3.0.0版)标记重复序列。采用GATK(4.4.0版)处理非重复BAM文件,重新校准碱基质量评分。最后,以BAM格式保存比对读段,用于后续体细胞突变及拷贝数变异检出。
| 2.3 正常样本面板(PoN)的构建
由于本研究仅使用肿瘤样本,构建正常样本面板(PoN)是减少胚系变异或样本制备伪影所致体细胞突变假阳性的关键步骤。使用SRA Toolkit(v3.1.0),于2024年10月20日从NCBI BioProject PRJNA795330随机选择50份血液来源WES数据集,获取FASTQ文件,作为构建PoN的正常样本。PoN所纳入患者的临床资料及平均测序深度见补充表S1。所有血液WES样本均使用与肿瘤样本相同的流程处理。随后对每份正常样本以仅肿瘤模式运行Mutect2,并使用CreateSomaticPanelOfNormals合并所得VCF文件。
| 2.4 体细胞突变检出
使用GATK4(v4.4.0.0)Mutect2,以仅肿瘤模式及默认参数,从各肿瘤BAM文件中识别体细胞单核苷酸变异(SNV)及小片段插入缺失。运行时纳入PoN VCF文件,以过滤假阳性体细胞变异。进一步使用GATK4中的FilterMutectCalls依据污染比例过滤变异,仅保留通过过滤且测序深度(DP)>10的体细胞变异。使用OpenCRAVAT(https://run.opencravat.org,访问日期:2024年11月19日),参照癌症体细胞突变目录(COSMIC)数据库对剩余突变进行注释。注释后的突变保存为MAF文件,随后使用R(v4.3.0)的maftools程序包汇总突变谱并可视化。使用自定义癌症相关基因面板(905个基因,补充表S2)过滤变异,以识别癌症相关基因;该面板来源于公开资源,包括COSMIC v101数据库GRCh38版本的Cancer Gene Consensus及儿童癌症变异致病性信息交换平台(PeCanPIE)。
| 2.5 突变特征分析
癌细胞中的体细胞突变源自多种突变过程,包括内部机制及外部暴露。每种过程产生特征性的突变类型组合,称为突变特征,其对癌症发生具有重要意义。本研究采用SigProfiler(https://cancer.sanger.ac.uk/signatures/assignment/,访问日期:2024年11月23日)默认设置进行突变特征拟合。从MAF文件获取突变谱,再拟合至包含86种单碱基替换(SBS)特征的COSMIC 3.4版,以确定已知突变过程的贡献。使用SigProfiler内的SigProfilerPlotting模块及默认选项展示结果。
| 2.6 癌症驱动基因及治疗靶点、药物反应生物标志物的识别
为注释赋予癌细胞生长优势并促进HB发生发展的驱动突变,使用Cancer Genome Interpreter(CGI;https://www.cancergenomeinterpreter.org,访问日期:2025年2月3日)分析MAF文件中所有已注释体细胞突变。采用两种在线机器学习工具BoostDM和OncodriveMUT,识别潜在驱动突变以及抗癌治疗和药物反应生物标志物,注释时将HB选为癌种。两种方法均依据已验证致癌突变目录,将变异分为已注释(已知)驱动突变、预测驱动突变及乘客突变。
| 2.7 拷贝数变异(CNV)检出
使用CNVkit(v0.9.4)分析拷贝数变异,将肿瘤BAM文件与由50份血液WES样本建立的正常参考进行比较。生成拷贝数比值的log2值,并采用环状二元分割(CBS)算法分段。在CNV检出前,使用PureCN(v2.0.1)估计的平均肿瘤倍性值对分段比值归一化,并以肿瘤纯度作为阈值。通过GenePattern网页界面(https://www.genepattern.org/,访问日期:2024年11月22日),使用GISTIC(v2.0)默认参数识别染色体臂及基因水平显著扩增或缺失的区域。采用R程序包maftools和ggplot2可视化。拷贝数状态定义如下:缺失(CN=−2)、丢失(CN=−1)、正常(CN=0)、增益(CN=1)和扩增(CN=2)。
| 2.8 功能及通路富集分析
采用DAVID在线工具(https://davidbioinformatics.nih.gov/,访问日期:2025年2月3日)进行基因本体(GO)富集分析,评估HB中受体细胞突变及CNV改变影响的基因的生物学功能。GO术语分为三个类别:生物过程(BP)、细胞组分(CC)和分子功能(MF)。此外,使用KEGG及Reactome通路数据库,探索携带体细胞突变和CNV的基因在已知信号及代谢通路中的参与情况。KEGG和Reactome富集分析同样采用DAVID,排除包含少于10个基因的通路。q值<0.05视为显著富集。采用R的ggplot2程序包可视化结果。
| 2.9 生存分析
总生存(OS)定义为从初次确诊至死亡或末次随访的时间;无病生存(DFS)定义为从确诊至复发、疾病进展、死亡或末次联系的时间,以最先发生者为准。依据基因组改变,将患者按突变状态(突变型与野生型)或CNV状态(扩增与缺失)分组。采用Kaplan–Meier曲线估计中位OS和DFS,并用log-rank检验分析组间差异。根据适用情况,采用卡方检验或Fisher确切检验分析临床病理变量与基因组改变状态的关系。统计学显著性设为p值<0.05。
| 2.10 CNV的表达及预后价值验证
为验证与HB生存相关的CNV驱动基因,从R2基因组分析及可视化平台(https://hgserver1.amc.nl/,访问日期:2025年2月26日)获取RNA表达数据集,包括Raymond(GSE104766)、Carrillo-Reixach(GSE133039)、Kappler(GSE151347)、Ikeda(GSE131329)及López-Terrada(GSE75271)。此外,从人类蛋白质图谱数据库(v22.0;https://www.proteinatlas.org/,访问日期:2025年2月26日)收集583例肝细胞癌(HCC)患者的基因表达与生存资料,用于生存分析。
3| 结果
| 3.1 34例HB患者的基线特征
本研究共纳入34例HB患者,其临床病理特征见表1。队列包括23例男性和11例女性,年龄为1个月至11岁6个月。HB通常见于3岁以下儿童,男性居多。依据治疗前临床影像学检查,PRETEXT系统将14例HB(41.2%)分为Ⅱ期、13例(38.2%)分为Ⅲ期、7例(20.6%)分为Ⅳ期。所有HB患者均按泰国儿童肿瘤协作组(ThaiPOG)方案的风险分层指南接受治疗,其中6例(17.6%)为低危、12例(35.3%)为中危、16例(47.1%)为高危。确诊时血清AFP中位水平为57,335 ng/mL(范围:1~800,464 ng/mL)。仅3例(8.8%)确诊时血清AFP低于100 ng/mL,这一水平与不良预后相关。
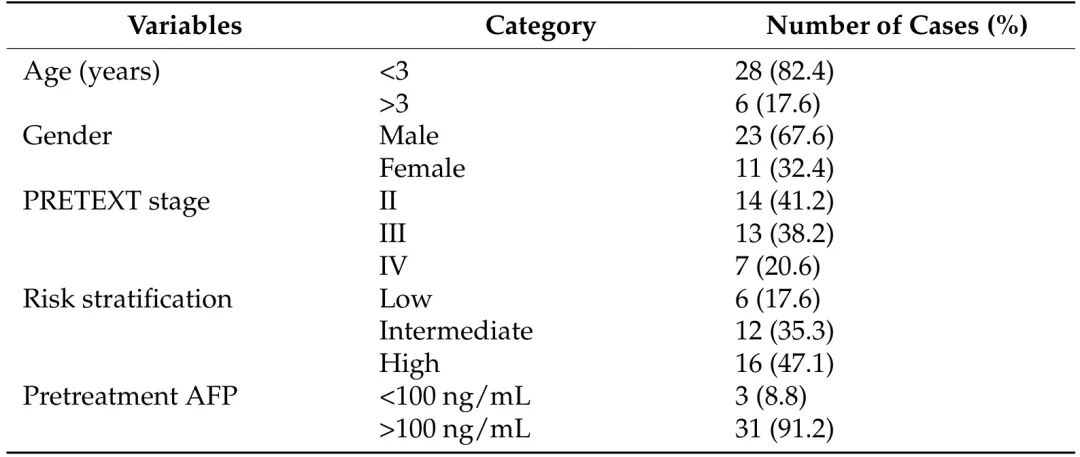
表1 本研究纳入的34例HB患者的临床病理特征。
| 3.2 34例HB患者的突变谱
为识别HB肿瘤的基因组改变,对34例患者样本进行全外显子测序(WES)。使用Trimmomatic处理原始测序读段(FASTQ文件),去除Illumina接头、低质量碱基(Phred评分<15)及短读段(<36 bp),再使用BWA比对至人类参考基因组(GRCh38)。靶区域平均测序深度约为102.25×。共检出94个基因中的123个体细胞突变,每例平均3.6个突变(0.06个突变/Mb)。突变最常见的15个基因为KMT2D、CTNNB1、AGL、CYP2D6、BICD2、ADAMTSL4、D2HGDH、DRC1、SNCAIP、SURF1、ZNF423、DNAH11、ITPKB、MUC16及PDSS2(图1A)。我们还将HB的肿瘤突变负荷(TMB)与癌症基因组图谱(TCGA)数据库中32种不同癌症进行比较。分析显示,在所评估的全部癌种中,HB的TMB最低(图1B)。此外,本研究发现17个已知参与儿童癌症的癌症相关基因发生突变,包括KMT2D、CTNNB1、MUC16、RAG1、BLM、CASP9、CDKN2A、GNAS、IKBKB、LIFR、MSH2、MSH6、NRAS、PTPRC、RANBP2、TP53及ZFHX3。其中,KMT2D、CTNNB1及MUC16错义突变是最常见的改变之一。
为分析共突变及相互排斥模式,采用Fisher确切检验对已识别的HB癌症相关基因进行两两重叠分析。显著的成对相互作用见图1C。值得注意的是,癌基因MUC16的突变仅与TP53突变共现。
| 3.3 突变特征揭示HB中化疗相关DNA损伤
对34例HB基因组的WGS数据进行体细胞碱基替换模式分析(图1D),发现最常见的碱基替换为C>T转换(57.4%),其次为T>C转换(16.4%)和C>G颠换(15.6%)。将这些替换模式分解为已知COSMIC突变特征,显示特征1、特征5及特征31的贡献分别为49.2%、34.4%和16.4%(图1E)。特征1及特征5与衰老相关,见于多种成人和儿童癌症。然而,HB的TMB与确诊年龄无显著关联(Spearman相关系数=0.018,p=0.509)(图1F)。此外,所有样本此前均接受过含铂化疗,SBS31的存在与治疗相关致突变作用一致。这提示所观察到的相当一部分突变很可能反映化疗诱导的DNA损伤及修复机制,而非肿瘤内在生物学特征。
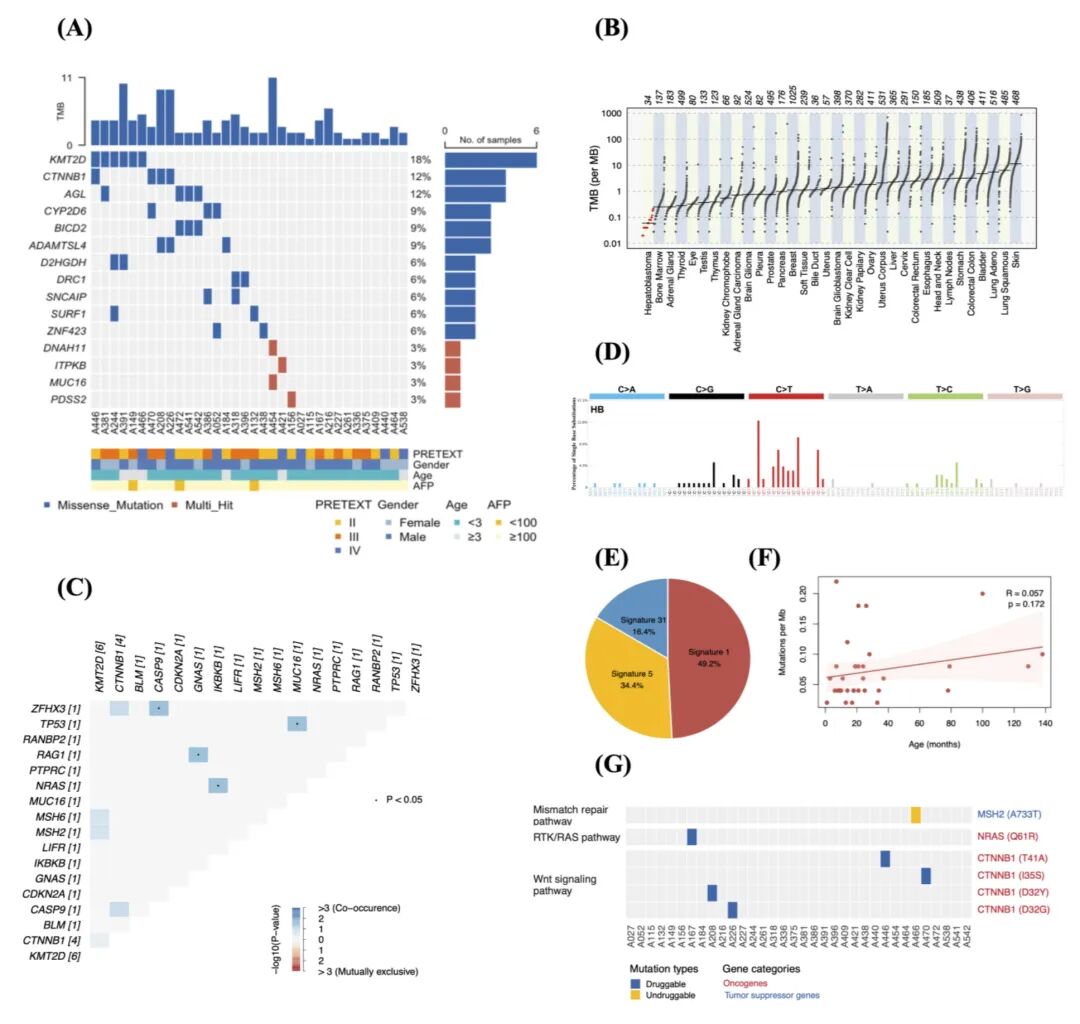
1 HB的基因组谱及突变特征。(A)34例HB的体细胞突变分布。(B)TCGA数据集间肿瘤突变负荷(TMB)比较,HB样本以红色突出显示。(C)癌症相关基因的体细胞相互作用,共现以蓝色表示,相互排斥以红色表示,显著事件以圆点标记(p<0.05)。(D)由HB突变目录推导的突变特征。(E)各突变特征的相对贡献。(F)确诊年龄与TMB的相关性,采用Spearman相关分析评估。(G)34例HB驱动突变的分布,分为可成药(蓝色)或不可成药(黄色);癌基因标为红色,抑癌基因标为蓝色。
| 3.4 HB驱动突变及潜在治疗靶点的识别
采用CGI评估本研究识别的123个独特变异。分析在MSH2、NRAS及CTNNB1三个基因中发现驱动突变(图1G)。其中,CTNNB1驱动突变在HB中检出最多,导致β-catenin无法降解。这会异常激活Wnt通路,促进HB及多种癌症中细胞失控增殖和肿瘤形成。还使用CGI识别检出驱动突变的潜在药物靶点。分析提示NRAS和CTNNB1两个癌症驱动基因存在可成药突变,汇总于补充表S3。尽管尚未评估含铂药物在携带这些突变HB病例中的疗效,既往临床试验已显示,携带NRAS(Q61R)突变的皮肤黑色素瘤对化疗药物反应良好;该突变见于约3%的HB病例。此外,临床前研究提示CTNNB1(T41A、I35S、D32Y及D32G)突变可能是结直肠癌酪氨酸激酶抑制剂耐药的生物标志物。因此,应谨慎解读这些发现,仍需在HB中开展进一步功能及临床研究,以确定其治疗相关性。
| 3.5 34例HB患者的CNV谱
对34份HB样本的GISTIC分析揭示显著的染色体异常,包括染色体臂及癌症相关基因的扩增和缺失。9p、11p、20p、20q及22q染色体臂出现广泛扩增区域,4q、7p、7q、19p、19q及22p出现缺失(补充表S4)。GISTIC进一步在39个细胞遗传学带区识别出覆盖301个基因的局灶峰,包括18个扩增区域和21个缺失区域(图2A及补充表S5)。每个肿瘤平均有181.5个局灶性拷贝数改变,范围为125~242个。最常扩增的区域为19p13.2,见于23.5%的样本,涉及MUC16;其次为12q13.13(8.8%),涉及KRT5。最常缺失的区域为19p12,见于17.6%的样本,影响癌症相关基因ZNF429。另一处缺失涉及12p11.21(14.7%),该区域包含已知癌症基因FGD4(图2B)。
此外,对39个显著CNV片段中识别的301个基因进行富集及通路分析,评估其功能。GO分析显示,这些基因参与RNA聚合酶Ⅱ介导的转录调控、上皮细胞分化、细胞质溶胶及DNA结合(图2C)。KEGG和Reactome分析显示,CNV相关基因富集于转录调控及发育生物学相关通路(图2D)。由于多数富集通路与转录、分化和发育有关,这支持了既往研究的观点,即胎肝发育过程中转录通路失调可能在HB发生中发挥关键作用。
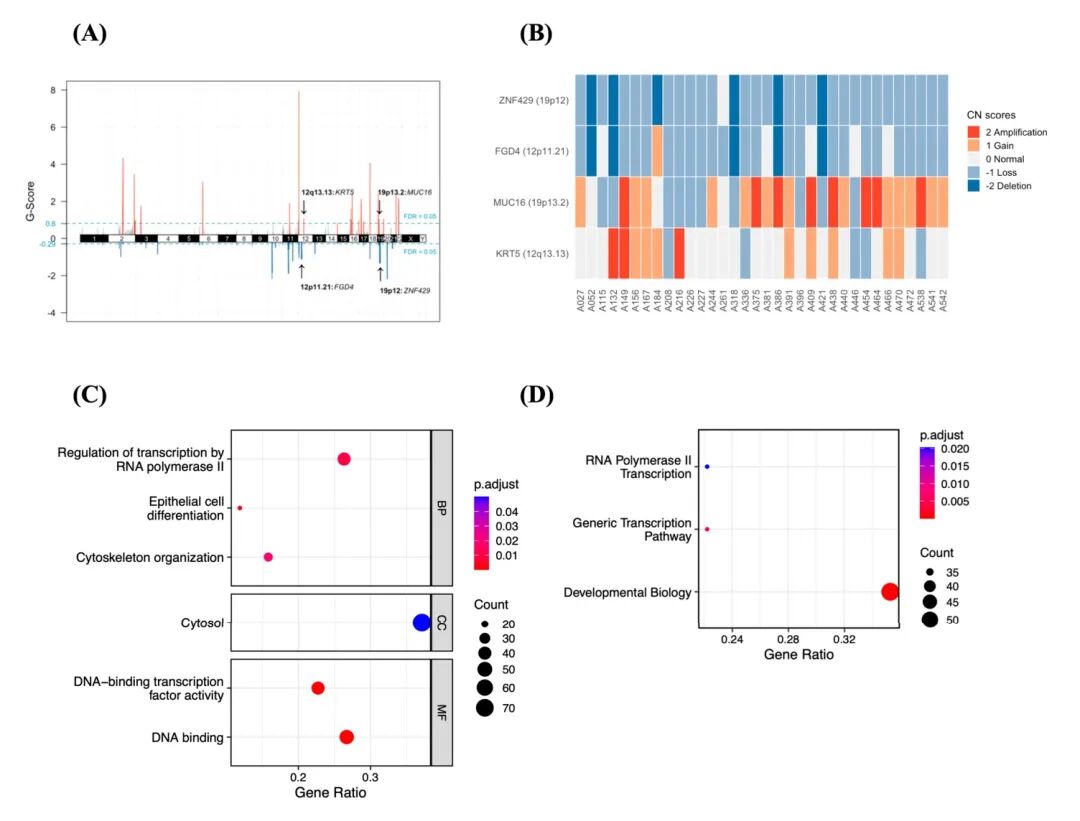
2 HB的体细胞拷贝数变异(CNV)谱及通路富集。(A)34例HB的显著局灶性扩增(红色)与缺失(蓝色),蓝线表示0.05的错误发现率(FDR)阈值。(B)癌症相关基因的CNV分布。(C)CNV区域内301个基因的基因本体(GO)富集分析及(D)KEGG/Reactome通路分析。
| 3.6 HB的基因组改变及临床相关性
从最常见的15种体细胞突变及CNV谱中选择癌症相关基因,评估其临床意义(补充图S1)。Kaplan–Meier曲线显示,存在与不存在FGD4及ZNF429缺失患者的DFS和OS具有明显差异(图3A)。
FGD4缺失患者的结局显著更差,中位DFS为14.9个月,而未缺失者为96.9个月(p=0.01);中位OS分别为48.8和96.9个月(p=0.02)。同样,ZNF429缺失与较差生存相关,中位DFS为14.9对96.9个月(p=0.0006),中位OS为14.9对110.0个月(p=0.001)。
我们还评估了临床病理变量与FGD4及ZNF429缺失的关系,详见补充表S6。这些缺失与HB患者的任何临床病理因素均无显著关联。
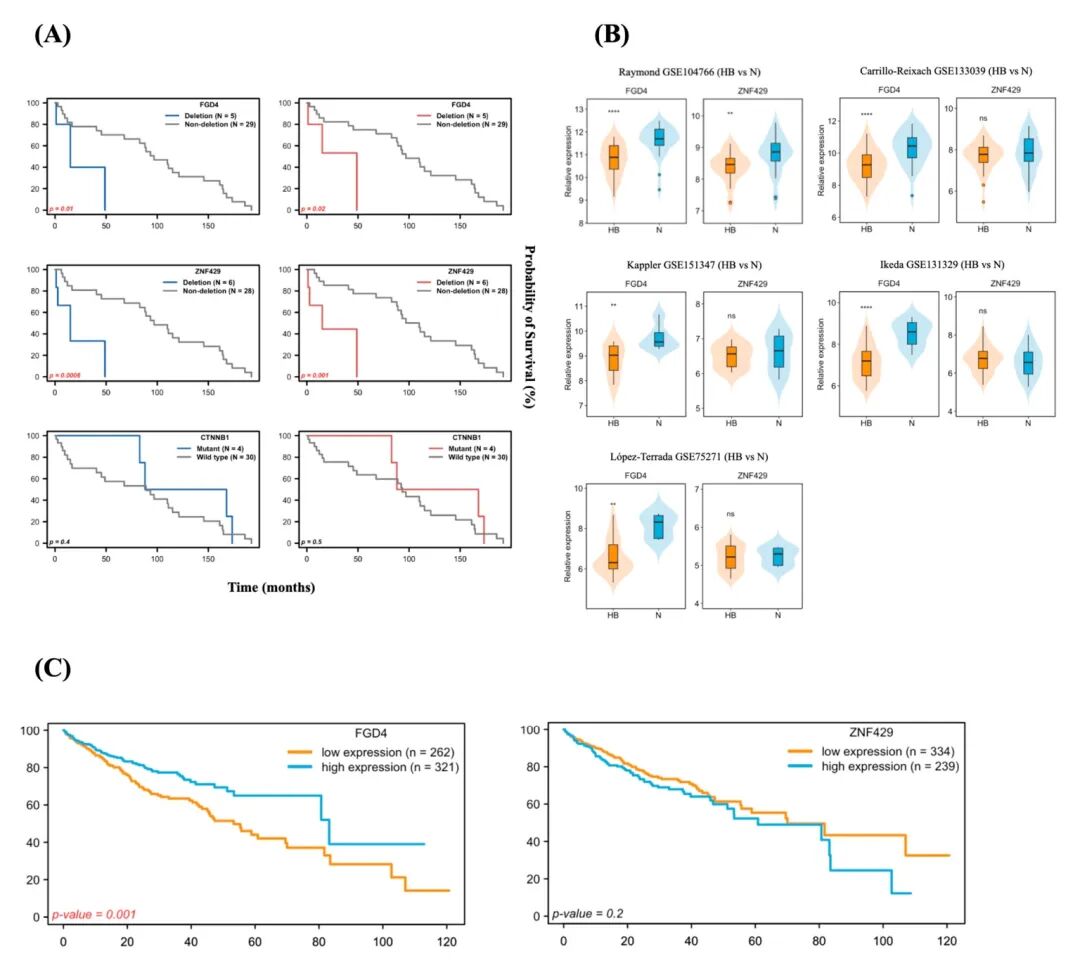
3 CNV相关基因及其表达的预后影响。(A)34例HB患者的Kaplan–Meier生存曲线,显示无病生存(DFS,蓝色)及总生存(OS,红色),比较存在与不存在FGD4缺失(n=5对n=29)、ZNF429缺失(n=6对n=28)及CTNNB1突变(n=4对n=30)的病例。显著性采用log-rank检验确定。(B)5个独立GEO数据集中HB与正常肝组织(N)的FGD4及ZNF429 RNA表达水平:Raymond GSE104766(HB=30,n=30)、Carrillo-Reixach GSE133039(HB=31,n=32)、Kappler GSE151347(HB=11,n=11)、Ikeda GSE131329(HB=53,n=14)及López-Terrada GSE75271(HB=50,n=5)。采用Student t检验确定统计学显著性,**表示p<0.01,****表示p<0.0001。(C)来自人类蛋白质图谱的HCC患者(n=583)按FGD4及ZNF429高、低表达分层后的总生存Kaplan–Meier曲线。显著性采用log-rank检验确定。
此外,我们重点关注本研究最常改变的驱动基因CTNNB1(34例中4例;11.8%)。在所有HB患者中,携带CTNNB1突变者(n=4)似乎对含铂化疗反应更好,并呈现结局改善趋势。
CTNNB1突变组中位OS为128个月,野生型组(n=30)为93个月,但差异无统计学显著性(p=0.5)。同样,CTNNB1突变患者中位DFS为128个月,无突变者为89个月(p=0.4)(图3A)。
总体而言,这些发现提示FGD4或ZNF429缺失与较短OS和DFS显著相关。此外,虽然CTNNB1突变与未突变患者的OS和DFS差异无统计学显著性,但突变患者呈现生存更好、无病期更长的趋势。然而,鉴于特定改变亚组样本量较小,这些生存分析应视为探索性结果,并应谨慎考虑小队列的统计学局限。
| 3.7 FGD4作为肝癌不良预后相关潜在CNV驱动基因
多项研究显示,体细胞CNV可通过破坏基因功能或改变基因表达,促进多种癌症发生发展。依据显著拷贝数改变与差异基因表达之间的一致模式,识别CNV驱动基因。为评估发生缺失的FGD4和ZNF429表达水平,从R2数据库获取5个公开HB数据集(共175例)的数据(图3B)。我们发现,在所有数据集中,HB样本FGD4表达均显著低于正常肝组织。然而,ZNF429仅在一个数据集(Raymond GSE104766;HB=30例)中显示表达显著降低。
随后,评估FGD4和ZNF429基因高低表达肝癌患者的生存概率。由于HB患者生存资料有限,我们分析了来自人类蛋白质图谱数据库的肝细胞癌(HCC;n=583)患者数据。测定每例的表达水平,并以各基因的平均表达水平为界分为高、低表达组。
Kaplan–Meier分析显示,FGD4低表达患者的OS显著差于高表达者(图3C),中位OS为53.3对83.2个月(p=0.001)。低表达组5年生存率亦较低(44.0%对65.0%)。ZNF429低、高表达组OS差异无统计学显著性(图3C),中位OS为70.0对60.8个月(p=0.2),估计5年生存率为55.4%对52.3%。
总之,我们的发现提示FGD4可能是HB中的CNV驱动基因。此外,FGD4缺失与HB及肝癌的不良预后相关。
4| 讨论
我们对泰国HB患者的详细基因组分析显示一种独特分子谱:突变负荷极低,每个肿瘤平均仅有3.6个体细胞突变,同时CNV极多,每个肿瘤平均181.5个。这种基因组模式提示,HB的发生主要由大规模染色体改变驱动,而非点突变,这使其区别于通常具有更高突变负荷的许多成人癌症。本队列的主要突变特征(COSMIC特征1、5及31)为所观察突变的病因提供重要见解。这些特征与化疗诱导的DNA损伤及后续修复过程一致,提示相当一部分突变谱可能源于医源性因素,而非肿瘤起始事件。这一发现对于理解HB基因组随时间演化具有重要意义,并强调应谨慎解读治疗后样本检出的突变。治疗相关特征的普遍存在,凸显了尽可能分析治疗前样本的重要性,以区分驱动突变与治疗诱导改变。
我们的分析揭示关键驱动突变频率的差异。KMT2D突变最常见,见于18%的病例,在泰国队列中的频率高于CTNNB1突变,后者见于12%的病例。这与西方人群CTNNB1突变通常占优势的报道不同。Liu等在亚洲队列报告类似结果,包括相对较低的CTNNB1突变率(12.5%)及较高KMT2D突变频率(25%)。值得注意的是,该研究还证实,敲低KMT2D可显著抑制HB细胞生长,支持其在肿瘤发生中的功能作用。这些发现与我们的结果一致,提示KMT2D改变等替代性驱动事件,可能参与特定人群的肿瘤发生。KMT2D编码组蛋白甲基转移酶,负责组蛋白H3第4位赖氨酸(H3K4)的甲基化,该修饰与活跃基因转录相关。多种癌症均有KMT2D突变报道,且其与胰腺癌及乳腺癌的良好结局相关。然而,鉴于样本量相对较小,这一观察应视为假设。仍需在更大、独立的亚洲队列中验证,以确认这一潜在人群相关模式。
虽然本队列CTNNB1突变较少,但其可激活HB关键致癌驱动通路Wnt,因此仍具有临床重要性。我们的数据提示CTNNB1突变患者对含铂化疗反应更好的趋势。然而,由于样本量小,这些发现应视为探索性结果。这一观察与新近证据一致,即Wnt通路改变可能通过涉及DNA修复通路的机制提高化疗敏感性。
对于CGI识别的潜在治疗靶点(如NRAS和CTNNB1),必须强调,突变与药物反应的拟议关联主要依据黑色素瘤、结直肠癌等其他癌种研究。致癌信号及药物疗效高度依赖组织和具体背景,因此不能将这些特定脆弱性直接外推至肝母细胞瘤。目前直接推断其在HB中的临床意义为时过早。这些潜在治疗方向仍严格停留于理论层面,在考虑任何临床应用前,需开展广泛临床前检测及验证,尤其是在HB模型中。
本队列中CNV高发,尤其是FGD4和ZNF429缺失,代表了对HB发病机制认识的范式转变。这些非突变机制可能是HB生长和进展的重要驱动因素。FGD4编码一种对细胞骨架组织至关重要的F-actin结合蛋白,其在HB样本中显著下调。既往前列腺癌研究表明,FGD4丢失可减少细胞增殖和迁移,并改变药物敏感性。相比之下,我们的发现显示,FGD4缺失及其显著下调与HB较短生存密切相关,可能通过破坏正常细胞极化,促进侵袭性、转移性表型。未来将通过详细功能研究,探索FGD4在细胞极化及转移信号中的具体作用。ZNF429是一种参与细胞分化及发育基因调控的锌指转录因子,也是染色体缺失的另一关键靶点。这些调控蛋白丢失可能破坏正常肝细胞成熟程序,促成HB特征性的未分化表型。FGD4与ZNF429缺失在许多肿瘤中共现,提示这些改变可能在HB发病过程中协同作用。
最值得注意的是,ZNF429或FGD4缺失与较短OS及DFS相关,提示其作为预后生物标志物的潜力。由于公开儿童HB生存资料有限,采用HCC数据集评估这些标志物。这种替代分析方法与近期儿童肝癌研究一致,因为HCC亦发生于儿童,且与HB共享某些潜在分子特性。这些发现为侵袭性肿瘤生物学提供初步证据,可能有助于完善未来风险分层。具体而言,携带这些缺失的患者可能从更密集监测、替代治疗计划或探索新疗法的临床试验中获益。然而,鉴于样本量有限,仍必须开展进一步功能研究,并在更大、独立的HB队列中验证,以确认这些标志物在精准治疗决策中的临床实用性。
本研究有若干局限。队列规模相对较小,限制了罕见改变的检出能力,可能无法全面反映泰国HB患者的基因组多样性。此外,样本量有限限制了生物信息学分析范围,也可能妨碍获得统计学显著结果。
一个主要方法学局限是缺少配对正常样本,限制了区分体细胞与胚系变异的能力。尽管采用正常样本面板及严格过滤标准,仅肿瘤分析仍更容易出现胚系变异假阳性,因此应谨慎解读结果。
此外,仅使用治疗后样本是本研究的重要混杂因素。检出化疗相关突变特征,尤其是SBS31,提示治疗诱导的DNA损伤已显著影响所观察到的基因组谱。这可能掩盖或改变潜在驱动事件,限制对肿瘤内在生物学的充分解释。最后,虽然因数据有限而不得不以HCC生存数据替代HB结局,但仍需在更大儿童HB队列中验证。
5| 结论
总之,本研究显示,泰国患者肝母细胞瘤具有独特基因组谱,其特征更多体现为拷贝数改变而非点突变,且驱动基因参与呈现独特族群特异模式。发现FGD4及ZNF429缺失作为预后生物标志物,代表HB分子分类及风险评估的重要进展。识别治疗反应相关分子亚型,尤其是CTNNB1突变肿瘤,提示应将基因组谱分析纳入临床决策。这些发现为开发个体化医学策略奠定基础,以适应不同人群HB的特定分子特征。
文献来源
Udomwimonsit R, Nokchan N, Choochuen P, Klaewtanong Y, Sangkhathat S, Sirichamratsakul K. Landscape of Somatic Alterations in Thai Pediatric Hepatoblastoma: Implications for Clinical Outcomes and Therapeutic Opportunities. Medicina. 2026;62:764. DOI: 10.3390/medicina62040764.