深度解析医学证据,lxfs.net为你支撑决策
谱系转换(Lineage switch, LS)是急性白血病一种罕见但侵袭性的表型转化,治疗选择有限,临床预后差。尽管在CD19靶向免疫治疗时代,LS已被越来越多地认识,但其生物学基础仍不完全清楚。大多数报道的儿童LS病例发生于KMT2A重排(KMT2A-r)白血病,突显了发育起源与谱系可塑性之间的联系。
本综述全面概述了儿童LS的临床、分子、表观遗传和细胞决定因素。作者系统回顾了文献,确定了1994年至2026年间报道的201例儿童LS病例。其中70.1%为B淋巴细胞白血病转换为急性髓系白血病,KMT2A-r(47.8%)和DUX4重排(14.9%)白血病是最常见的遗传亚型。在已发表的病例中,LS在贝林妥欧单抗暴露后发生的时间早于嵌合抗原受体细胞或单纯化疗后。还讨论了目前解释LS的机制概念,包括表观遗传重塑、染色质调控、发育程序、起源细胞以及促进谱系可塑性的治疗相关选择压力。
通过将临床证据与当前对白血病生物学的认识相结合,本综述为理解儿童白血病的LS提供了一个框架,并强调了未来研究、早期检测以及开发预防和/或治疗策略的优先事项。
引言
近几十年来,儿童急性淋巴细胞白血病(pALL)的治疗取得了显著成功,高收入国家的总生存率>90%,然而罕见但生物学上侵袭性的逃逸机制继续限制着某些病例的持久治愈。其中谱系转换(LS)代表了一种特别具有挑战性的急性白血病从一种造血谱系向另一种造血谱系的转化。LS可发生于治疗期间、复发时,或随着免疫治疗的引入而日益增多。尽管不常见,但LS与治疗耐药和缺乏标准化治疗策略相关。与其高度侵袭性的生物学特性一致,LS后的临床结局仍然极差。据报道,所有年龄组LS后的中位总生存期仅为2.9至4.8个月。
LS伴随形态学和免疫表型转化,同时保留原始的细胞遗传学或分子学病变,从而确认克隆连续性,并将LS与治疗相关的继发性恶性肿瘤区分开来。LS应明确区别于谱系漂移(lineage drift, LD)。LD是指白血病细胞部分免疫表型改变,特征为谱系相关标志物的获得或丢失,反映白血病谱系可塑性,但不符合完全LS的标准,因此不重新分类为不同的白血病谱系。
尽管LS在CD19靶向免疫治疗时代受到特别关注,但它并非新现象。早在靶向免疫治疗引入之前,就有患者在传统化疗后复发的病例被描述。
在未经选择的儿童队列中,LS发生于不到1%的病例,但在复发疾病中更为常见,发生率约为6%-9%。在携带KMT2A重排(KMT2A-r)的白血病中,这一发生率增至约7%,在该亚组复发时进一步升至近20%。KMT2A位于染色体11q23.3,可编码组蛋白-赖氨酸N-甲基转移酶2A,在pALL和儿童急性髓系白血病(AML)中反复发生重排。这种易感性在婴儿中尤为显著,其中高达80%的B淋巴细胞白血病(B-ALL)病例可检测到KMT2A-r,此外谱系可塑性是其决定性生物学特征。KMT2A-r B-ALL常表现出基线髓系抗原表达,历史上被称为混合谱系白血病(MLL),这一命名可能更准确地反映了这些白血病的内在谱系可塑性和临床行为。根据当前命名标准,本综述将全程使用KMT2A这一术语。
然而事实上,LS并不局限于KMT2A-r白血病,且在靶向免疫治疗的背景下正日益被认识。除KMT2A-r外,更广泛的遗传改变谱也牵涉其中,包括DUX4重排(DUX4-r)白血病,似乎倾向于单核细胞性LS,以及ZNF384重排(ZNF384-r)白血病,其内在特征为谱系模糊性。DUX4-r的谱系不忠性与一些不常见的临床行为相结合,即MRD反应明显缓慢,反映对经典3药或4药诱导治疗的初始反应相对较差,但长期生存仍然极好。
LS的病理生理学仍不完全清楚,已提出多种机制模型,包括:治疗诱导的选择预先存在的具有替代谱系身份的小亚克隆、多能白血病祖细胞的重新编程,以及谱系定向的B细胞前体去分化后获得新的分化程序。
因此,本综述对报道发生LS的儿童急性白血病的遗传亚型、既往治疗暴露和免疫表型分类进行了叙述性比较。本文随后讨论了表观遗传调控因子和染色质重塑通路在LS发病机制中的作用,整合了关于起源细胞、胎儿发育程序、发育阶段特异性脆弱性以及协同次级突变与一线治疗策略和治疗相关选择压力的见解。鉴于CD19靶向免疫治疗时代LS发生频率增加,还特别讨论了贝林妥欧单抗和嵌合抗原受体(CAR)-T细胞治疗后发生的病例。
临床特征
为描述儿童白血病LS的临床特征,作者使用PubMed研究数据库进行了文献综述,搜索词为"pediatric leukemia"和"lineage switch"。在确定的108条记录中(最后访问日期2026年5月27日),纳入了1994年至2026年间发表的49项研究和病例报告进行分析。在这些出版物中共提取了201例个体儿童LS病例。虽然该队列是迄今为止已发表儿童LS病例最全面的汇编,但观察到的频率和亚型分布应谨慎解读,因为它们可能受到发表偏倚、漏报和研究间病例特征异质性的影响。符合条件的出版物包括描述确诊从一种白血病表型转换为另一种白血病表型的儿童患者(0-19岁)的病例报告和临床研究。纳入了初诊时和复发时发生的LS病例。对于多次报道LS的患者,仅纳入首次记录的LS事件。在可获得的情况下,系统提取以下变量:初诊时的细胞遗传学和分子学改变、LS时的额外遗传学异常、和LS时通过流式细胞术进行的免疫表型特征、白血病亚型、报道病例数、患者性别、初诊时年龄、至LS的间隔、LS前后给予的治疗以及临床结局。所有提取的病例级数据见补充表S1,研究选择流程见图1。
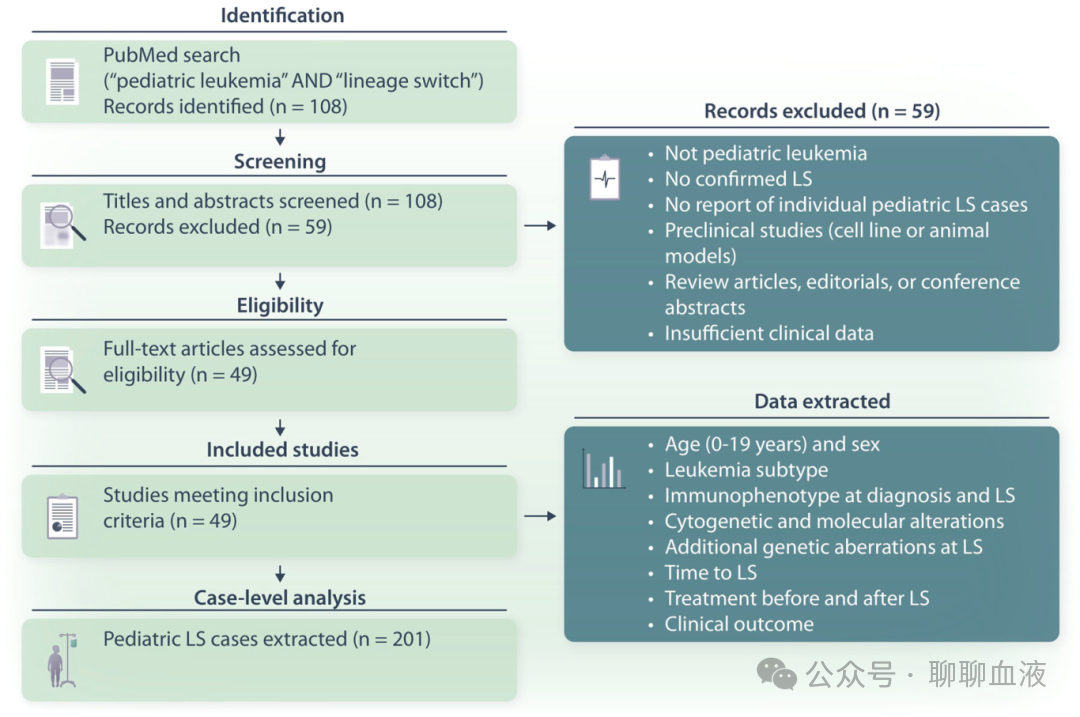
图1.儿童谱系转换(LS)白血病病例文献综述的研究选择过程。使用术语“pediatric leukemia”和“lineage switch”进行 PubMed检索,识别出108条记录(最后访问日期:2026年05月27日)。在标题和摘要筛选后,49篇出版物符合预定义的入选标准,并被纳入定性综合中。在这些研究中,确定了201例个体儿科 LS病例,并纳入病例水平分析中。提取的变量包括人口统计学特征、白血病亚型、免疫表型特征、细胞遗传学和分子学改变、至 LS的时间间隔、治疗史和临床结局。如果记录未报告确诊 LS的儿科患者、代表临床前研究(细胞系或动物模型)、综述文章、会议摘要或缺乏足够的临床信息进行病例级数据提取,则将其排除。表 S1包含所有提取的病例级数据。
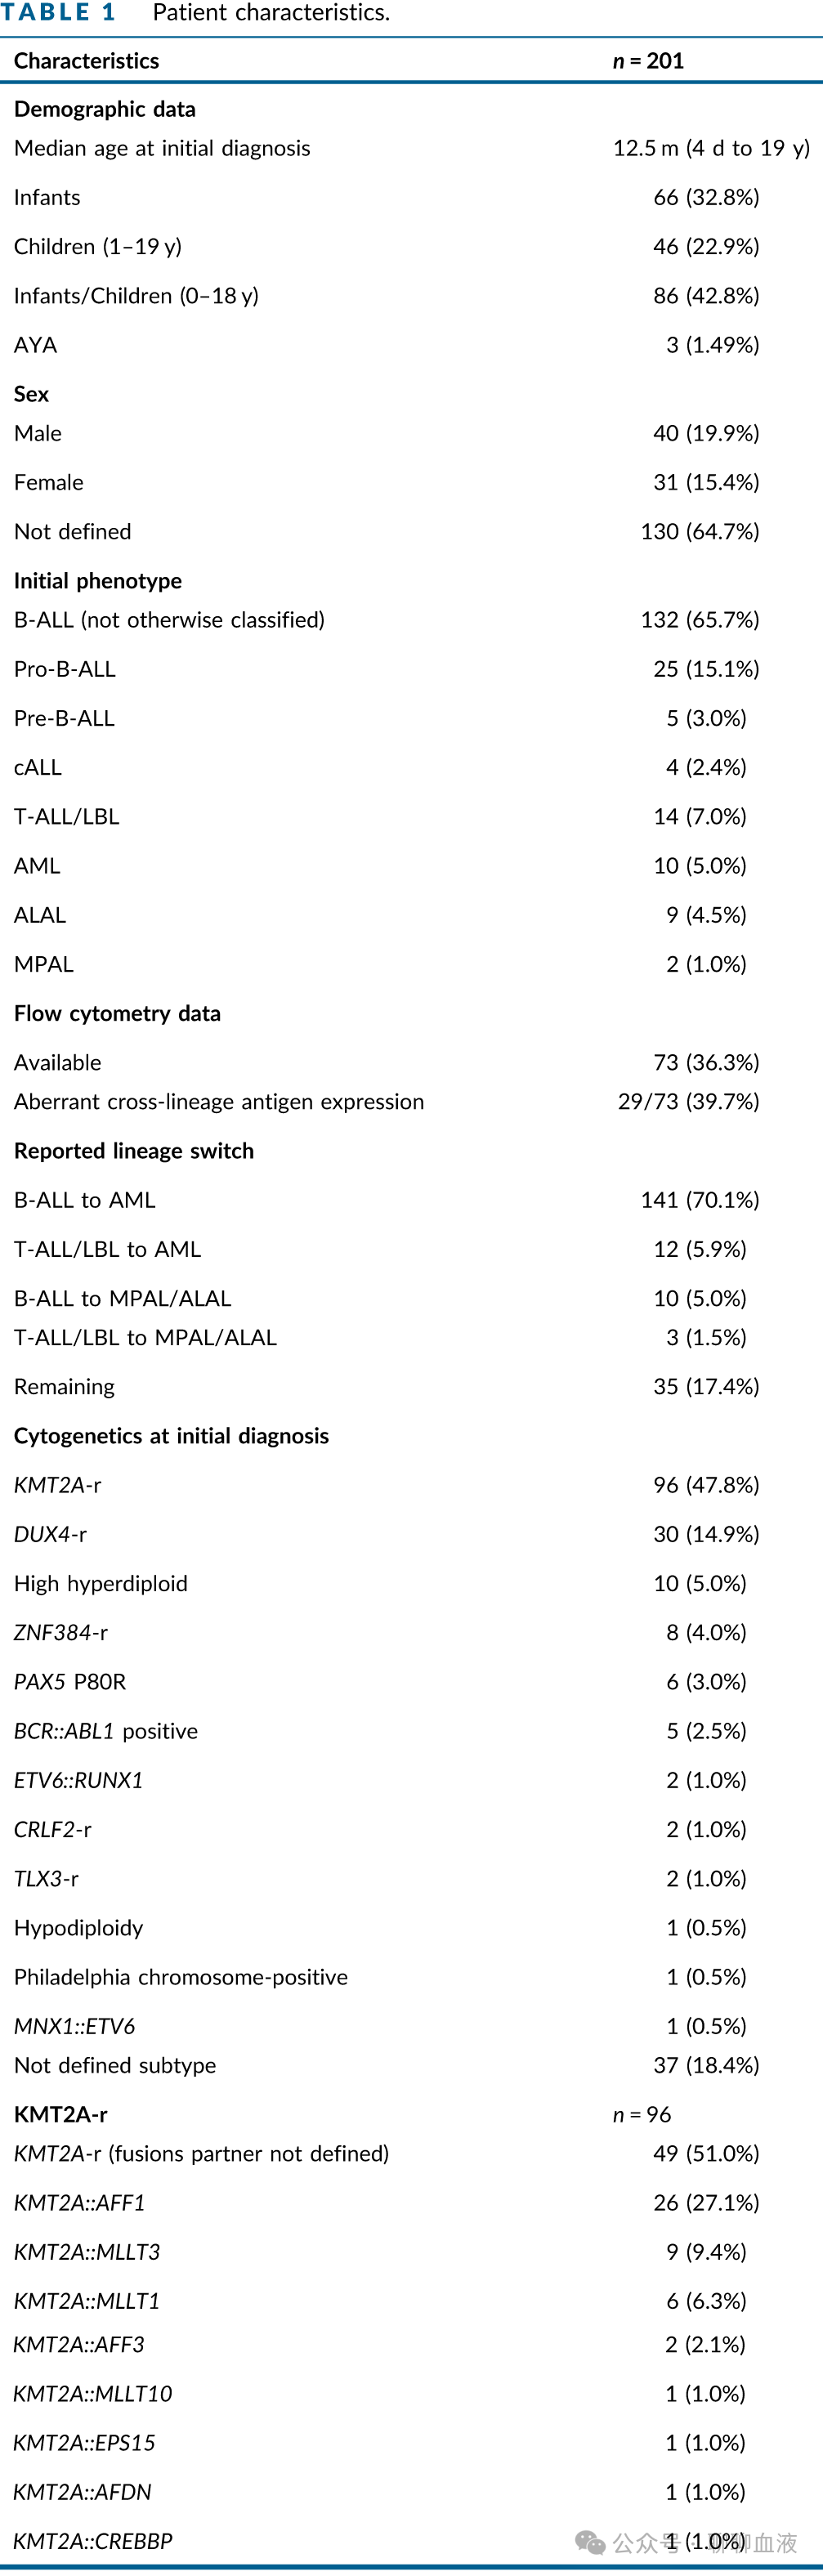
初诊时中位年龄为12.5个月(范围4天至19岁)。根据现有信息,该队列包括66例婴儿(0-12个月)、46例儿童(1-19岁)、86例描述为婴儿/儿童(0-18岁)以及3例青少年和年轻成人(AYA)(表1)。
LS主要在骨髓(BM)中识别,发生在198/201例(98.5%)中。然而也有3例无BM受累,包括1例孤立性髓系中枢神经系统白血病、1例表现为胸部脊髓髓系肉瘤的混合表型急性白血病(MPAL)以及1例无可检测BM疾病的孤立性髓系肉瘤。
白血病表型
在201例报道的LS病例中,主要转换为B-ALL至AML,占141例(70.1%)。其他转换包括T-急性淋巴细胞白血病(T-ALL)至AML 12例(5.9%)、B-ALL至MPAL/模糊谱系急性白血病(ALAL)10例(5.0%)、T-ALL至MPAL/ALAL 3例(1.5%),而其余35例(17.4%)包括较少见的表型组合。
初始表型为B-ALL者166/201例(82.6%),包括前B-ALL(CD19⁺CD10⁻胞质免疫球蛋白[cyIg]⁺,n=25,15.1%)、前前B-ALL(CD19⁺CD10⁺cyIg⁺,n=5,3.0%)、普通急性淋巴细胞白血病(cALL)(CD19⁺CD10⁺cyIg⁺,n=4,2.4%),而132例(79.5%)分类为B-ALL,非特指。第二大亚组为T-ALL/LBL,包括13例T-ALL和1例T淋巴母细胞淋巴瘤(T-LBL),共14例(7.0%),其次为AML 10例(5.0%)、ALAL 9例(4.5%)和MPAL 2例(1.0%)。表型转换见图2。
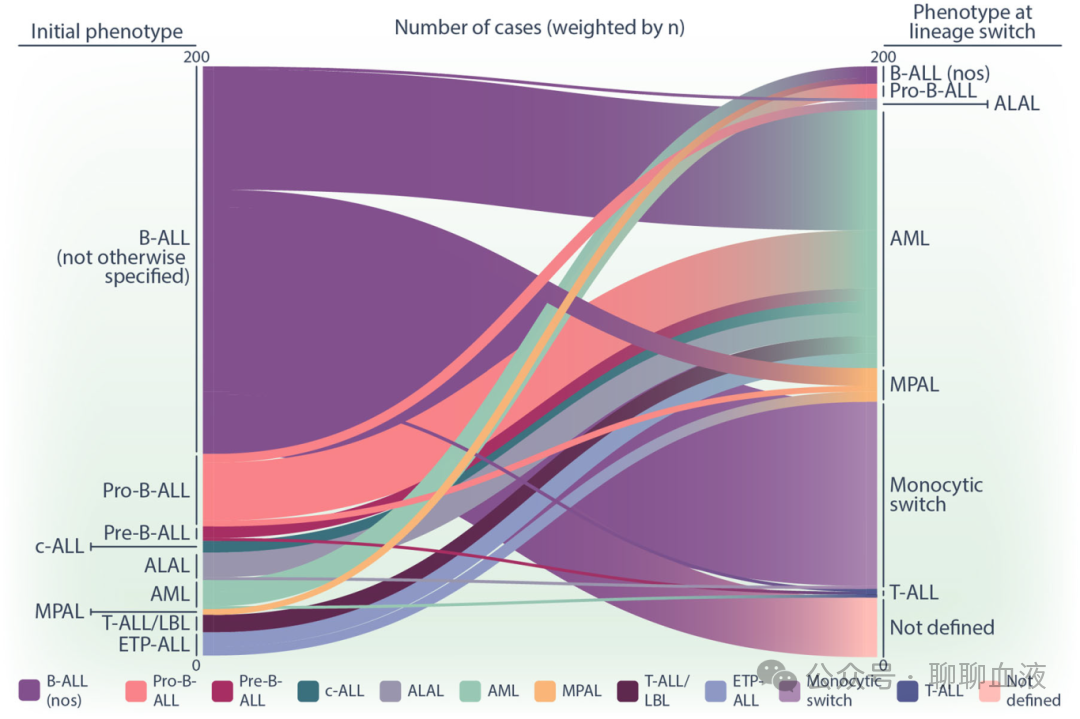
图2.报告的儿童急性白血病病例中谱系转换(LS)的表型转变。冲积图显示了报告的儿童急性白血病病例(n = 201;包括1例 T细胞淋巴瘤病例)中 LS时间点观察到的初始白血病表型和表型之间的转换。根据报告的病例数对每个流量的宽度进行加权。大多数 LS起源于 B淋巴细胞白血病(B-ALL),主要向急性髓系白血病(AML)或单核细胞表型转变。根据已报道的流式细胞免疫表型,包括CD19、CD10和胞浆免疫球蛋白(cyIgμ)表达,将B‐ALL细分为pro‐B‐ALL、pre‐B‐ALL和常见急性淋巴细胞白血病(cALL)。缺乏详细流式细胞术特征的病例分组为未另行说明的B-ALL(nos)(B-ALL‐nos[n = 132]、pro‐B‐ALL[CD19+ CD10−cyIgμ−,n = 25]、pre‐BALL[CD19+ CD10+ cyIgμ+,n = 5]、cALL[CD19+ CD10+ cyIgμ−,n = 4]、T‐淋巴母细胞白血病/淋巴瘤 [T‐ALL/LBL][n = 14]、AML[n = 10]、不明确谱系的急性白血病 [ALAL][n = 9]和混合表型急性白血病 [MPAL][n = 2])。
遗传学
在UKALL2003试验入组的大型儿童B-ALL队列中,诊断时细胞遗传学和分子亚型的分布见图 3A(排除BCR:ABL1阳性B-ALL)。相比之下,LS患者的细胞遗传学和分子学特征显示罕见亚型富集(图 3B)。KMT2A-r白血病是报道的儿童LS病例中的主要亚型,占96/201例(47.8%),其中KMT2A::AFF1是最常见的融合伴侣(n=26,占KMT2A-r病例的27.1%)。其他反复出现的改变包括DUX4-r(n=30,15.0%)、高超二倍体(n=10,5.0%)、ZNF384-r(n=8,4.0%)和PAX5 P80R(n=6,3.0%)。37例(18.4%)在初诊时无可供参考的遗传学数据,反映未进行基因检测、报告不完整或无可检测的反复遗传学改变。此外,73/201例(36.3%)在初诊和LS时均有全面的流式细胞术和/或免疫组化特征。在73例有可用流式细胞术的可评估病例中,29例(39.7%)在初诊时观察到异常跨谱系抗原表达,对应于全部201例中的29例(14.4%)(见表1和S1)。
次级基因突变
初诊时18例(9.0%)可见额外突变,例如KRAS、NRAS或PTEN突变,LS时增至32例(15.9%)。然而这些频率可能被低估,因为并非所有病例都有或报告了全面的分子分析,尤其是在较早的研究中。因此,未报告的次级突变不应被解释为其真正缺失。新出现的证据表明,这些病变并不直接诱导谱系转换,而是促进基因组不稳定性、克隆适应性和适应性应激耐受,从而促进治疗驱动的选择和预先存在的可塑性亚克隆的扩增。报道的改变最常涉及RAS通路(KRAS、NRAS、PTPN11和FLT3)和PI3K通路(PTEN),尽管由于纳入研究中分子检测和报告的不均一性,这些病变的真实患病率仍不确定。例如,TP53改变与CD19靶向治疗后抗原阴性复发相关,而激活的RAS通路突变可能在谱系转换期间增强干性相关和髓系转录程序。
治疗与结局
本分析纳入的201例儿童LS病例报道于1994年至2026年间,涵盖了白血病诊断、风险分层和治疗方法的大量变化。因此LS前报告的治疗暴露应在其历史背景下解读,因为当代免疫治疗,包括双特异性T细胞衔接器(BiTE)、抗体-药物偶联物和CAR-T细胞治疗,在该时期大部分时间内有限或不可用,可能不反映当前一线治疗实践。201例个体LS病例中LS前的治疗暴露是异质的。单纯化疗117例(58.2%)。化疗基础上加用贝林妥欧单抗10例(5.0%),化疗基础上加用CAR-T细胞23例(11.4%),化疗基础上加用奥加伊妥珠单抗1例(0.5%)。4例(2.0%)在LS前接受了联合免疫治疗方法。20例(10.0%)报道在LS前接受过免疫治疗但未进一步明确具体药物,包括贝林妥欧单抗、CAR-T细胞和奥加伊妥珠单抗。4例(2.0%)在LS前接受了未联合免疫治疗的造血干细胞移植(HSCT)。11例(5.5%)在LS前接受了HSCT联合免疫治疗。总体而言,69例(34.3%)在LS前接受了至少一种形式的免疫治疗。11例(5.5%)缺乏LS前治疗暴露的详细信息。LS前治疗暴露见图3C、D和表2及S1。
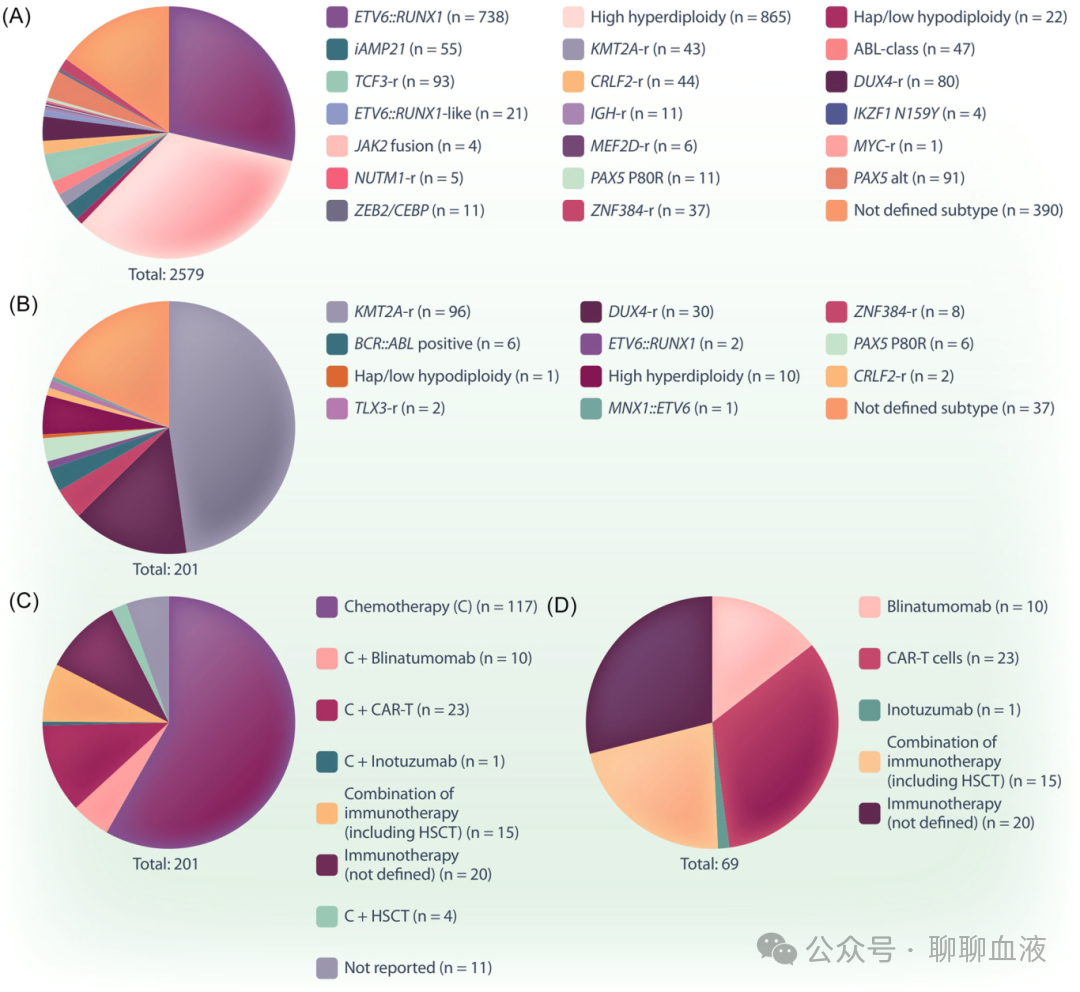
图3.报告的儿童急性白血病病例的细胞遗传学亚型分布和谱系转换(LS)前的治疗暴露。(A)UKALL2003临床试验(提取的n = 2579例 B-ALL患者的遗传学)中入组的儿科 B-ALL病例中细胞遗传学和分子亚型的分布,改编自 Vora等人和 Kirkwood等人(BCR:排除 ABL1阳性ALL)。缩略语:r,重排。(B)饼图显示了报告的 LS儿童急性白血病病例(n = 201)中初诊时细胞遗传学亚型的分布。与一般儿科 B-ALL人群相比,(A)KMT2A‐r白血病在报告的儿科 LS病例中被大幅过度代表。(B)无足够分子信息的病例归类为“未定义亚型”。(C)LS发生前给予的治疗分布(n = 201)。缺乏详细治疗信息的病例归类为“未报告”。缩略语:C,化疗。(D)接受免疫治疗相关治疗方案的患者发生 LS前的近端免疫治疗暴露总结(n = 69)。原始报告中未指明确切免疫治疗药物的病例分组为“未定义免疫治疗”。联合治疗方案包括联合免疫治疗方法和/或造血干细胞移植(HSCT)。
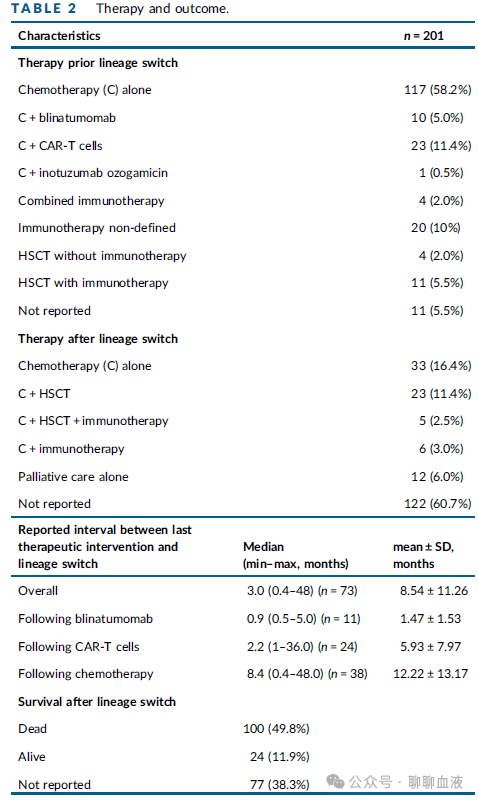
在接受化疗、贝林妥欧单抗或CAR-T细胞治疗并纳入治疗特异性至LS时间分析的患者中,末次治疗干预与LS之间的中位报告间隔为3.0个月(范围0.4-48个月)。至LS的时间在不同治疗组间存在显著差异。贝林妥欧单抗治疗后发生LS的患者至LS的间隔最短,中位时间为0.9个月(范围0.5-5个月)(表2)。事后Dunn多重比较检验表明,贝林妥欧单抗后至LS的时间显著短于CAR-T细胞治疗或化疗后(图4A)。
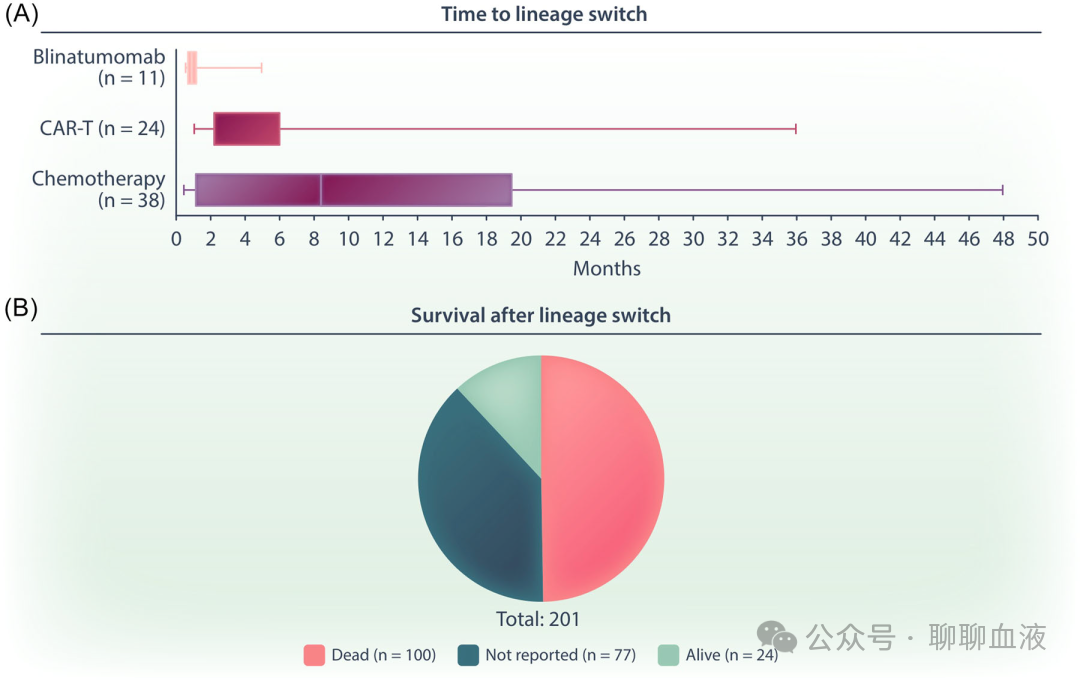
图4.在报告的儿童急性白血病病例中,末次治疗干预与谱系转换(LS)之间的时间间隔以及 LS后的生存结局。(A)箱须图显示化疗(n = 38)、嵌合抗原受体(CAR)-T细胞治疗(n = 24)或贝林妥欧单抗(n = 11)治疗患者报告的治疗干预与 LS之间的时间间隔。方框代表中位数和四分位距(IQR),须线代表最小值和最大值。治疗组之间的至 LS时间存在显著差异(Kruskal–Wallis,P < 0.0001)。事后 Dunn多重比较检验表明,与CAR‐T细胞治疗(校正的P = 0.0222)和化疗(校正的P = 0.0026)相比,贝林妥欧单抗治疗后的间隔时间显著缩短。考虑到每个治疗组中的患者数量较少、对已发表病例的限制以及治疗时间的异质性报告(尤其是化疗),应特别谨慎地解释这些结果。(B)饼图显示了报告的儿科急性白血病病例(n = 201)中 LS后的生存状态。LS后约一半报告的患者死亡(n = 100),而末次随访时仅少数报告存活(n = 24)。77例病例的结局数据不可用或未报告。
LS诊断后的治疗高度异质,主要由个体临床判断指导,反映缺乏既定治疗标准。方法从单纯化疗到包括HSCT和免疫治疗的多模式方案不等。12例(6.0%)接受姑息治疗,未进一步进行疾病导向治疗。详细治疗和结局数据(如可获得)见补充表S1。
总体而言,24例(11.9%)在LS后达到疾病缓解,并在末次报告随访时存活。相比之下,100例(49.8%)死亡,主要由于进展性或难治性疾病。然而77例(38.3%)的结局数据报告不完整,限制了全面的生存分析(图4B)。
在24例LS后报告存活的患者中,4例缺乏详细的LS后治疗信息。其余20例中,13例(65.0%)在HSCT后达到长期缓解。3例治疗方案中加入了靶向治疗,包括revumenib(n=1)、alvocidib(n=1)和索拉非尼(n=1)。此外,gemtuzumab ozogamicin(n=2)和米托蒽醌(n=2)也是成功治疗方法的组成部分。总体而言,大多数治疗策略基于含大剂量阿糖胞苷的强化方案,反映LS后以髓系表型为主。LS后治疗暴露的详细信息见补充表S1。
起源细胞与发育背景
白血病能否发生谱系转换与其起源细胞的特性有关。本文主要在B-ALL中LS的背景下讨论这一点,总结于图5。
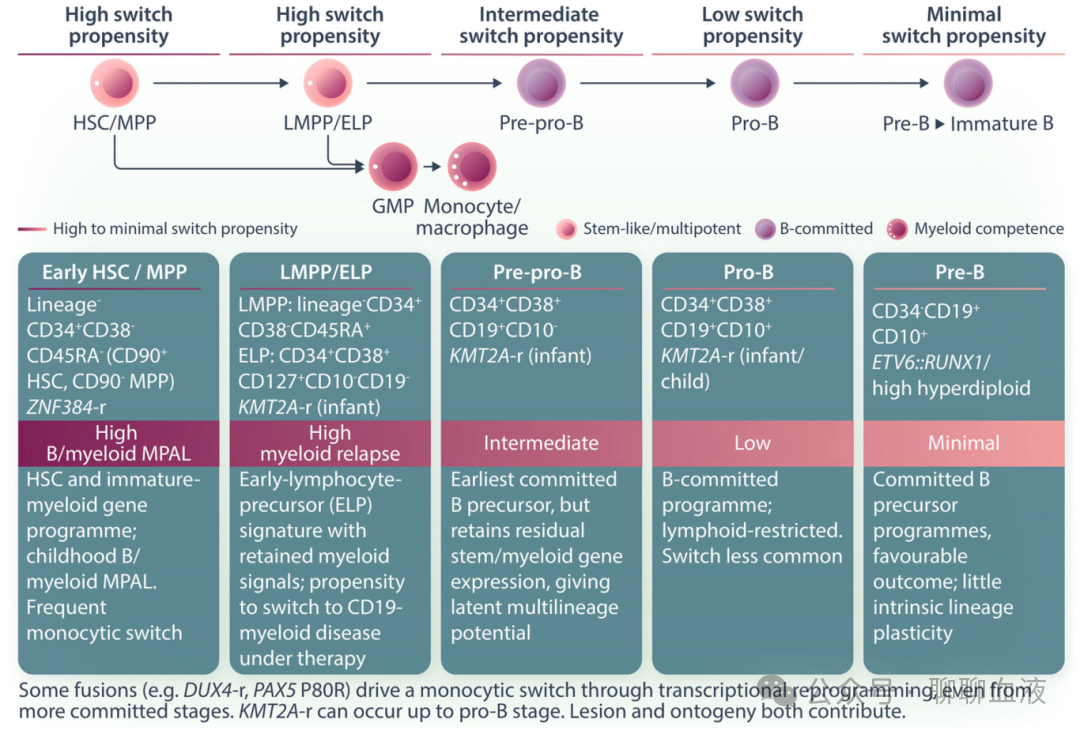
图5.B淋巴细胞白血病(B-ALL)的细胞起源和谱系转换(LS)倾向。候选起源细胞沿正常胎儿 B淋巴层级排列(造血干细胞 [HSC]/多能祖细胞 [MPP]→淋巴致敏多能祖细胞 [LMPP]/早期淋巴祖细胞 [ELP]→pre‐pro‐B→pro‐B→pre‐B/immature B)。颜色分级提出的从高(左)转换为最小(右)的倾向;粒细胞-巨噬细胞祖细胞(GMP)和单核/巨噬细胞的分支显示早期阶段保留的髓系输出。颜色表示茎样/多能状态、B承诺和髓系能力。细胞类型描述如下:HSC/MPP,谱系-CD34+ CD38-CD45RA-(CD90+ HSC,CD90-MPP);LMPP,谱系-CD34+ CD38-CD45RA+和ELP,CD34+ CD38+ CD127+ CD10-CD19-,保留髓系潜能;pre‐pro‐B,CD34+ CD38+ CD19+ CD10-;pro‐B,CD34+ CD38+ CD19+ CD10+;pre‐B,CD34−CD19+ CD10+,成熟为未成熟B,CD34−CD19+。这些隔室越来越被认为是一个连续体而不是离散门,每个种群内存在一些异质性。下图将每个状态与其相关亚型相关联。倾向在最早阶段最高:HSC/MPP样状态和 LMPP/ELP样状态(ZNF384-r和婴儿KMT2A‐r)保留髓系基因表达。前原 B状态保留残留的茎和髓系表达(中间倾向);前B(低)和前 B样阶段(ETV6:RUNX1,高超二倍体;最小)遵循定向的前体 B程序,可塑性很小。一些病变(DUX4‐r、PAX5 P80R)驱动单核细胞从更定向的阶段转换,KMT2A‐r可出现至pro‐B阶段。病变和个体发育均有贡献
在成人BM中,B谱系定向从自我更新的造血干细胞(HSC;Lineage⁻CD34⁺CD38⁻CD45RA⁺CD90⁺)通过多能祖细胞(MPP;Lineage⁻CD34⁺CD38⁺CD45RA⁺CD90⁺)、淋系启动的多能祖细胞(LMPP;Lineage⁻CD34⁺CD38⁺CD127⁺CD45RA⁺)和共同淋巴祖细胞(CLP;CD34⁺CD10⁺CD19⁺)进行到第一个CD19⁺、B定向祖细胞(CD34⁺CD10⁺CD19⁺),最终到成熟B细胞(CD34⁻CD19⁺)。对人类胎儿B淋巴生成的详细分析还发现了两种主要局限于胎儿期的状态:早期淋巴祖细胞(ELP;CD34⁺CD38⁺CD127/IL-7R⁺CD10⁺CD19⁺),具有联合B、自然杀伤(NK)、T淋巴和部分残余髓系潜力,以及CD10⁻前前B祖细胞(CD34⁺CD10⁻CD19⁺),代表人类胎儿造血中最早的B谱系限制细胞。这些胎儿特异性祖细胞具有成人对应物中未见到的独特转录程序。人类胎儿ELP和前前B祖细胞的转录与CD10⁻KMT2A-r婴儿ALL(iALL)原始细胞相似,提示这些发育阶段特异性特征可能在白血病生物学中发挥作用。两个变量可能决定LS倾向:起源细胞在造血层级中的发育位置,以及这种转化发生的发育/致癌窗口(胎儿vs.出生后)。下文将讨论这两者。
iALL起源于子宫内,易发生LS,提示胎儿造血干细胞和祖细胞(HSPC)的特征提供了许可性背景。在胎儿和成人生命中均已记录到从多能向主要寡/单能祖细胞的转换,提示胎儿中谱系限制较少。胎儿B祖细胞高度增殖并表达胎儿特异性基因,如LIN28B及其下游效应物,这些在出生后组织中沉默。这些胎儿分子程序使HSPC更易转化,可能是为什么单次宫内KMT2A-r 打击即可产生早发性iALL的原因,其侵袭性高于细胞遗传学相同的KMT2A-r老年儿童ALL。KMT2A-r iALL表现出与胎儿HSPC起源相符的转录特征。人类胎儿肝脏HSPC衍生的KMT2A::AFF1 iALL模型与KMT2A-r pALL不同,更准确地再现了iALL的特征,而非等同的出生后HSPC衍生模型。
白血病起源的祖细胞可能重要,原因有二。首先,它可能决定白血病是否保留多能性或可塑性。其次,如果起源细胞是CD19⁺上游的MPP,它可能逃避CD19导向的免疫治疗,并驱动不同谱系的复发。HSC或MPP是最原始的祖细胞,保留髓系、淋巴系和巨核-红系能力。MPP比淋巴系启动的细胞更原始,后者已失去巨核-红系潜力但保留多能性,而下游祖细胞则日益谱系限制。在胚胎干细胞来源的鼠HSPC而非更谱系定向的淋巴祖细胞中引入KMT2A::AF1,产生具有多谱系潜力和异常植入的独特CD24⁺前白血病状态。在鼠KMT2A::AF1模型中,miR-130b驱动类似LMPP的B/AML/髓系MPAL,而miR-128a驱动更谱系限制的前B-ALL。
LMPP下游的ELP主要存在于胎儿中。ELP对LS可能重要,因为尽管表型上主要为淋巴系,它们保留一些髓系潜力。在KMT2A-r iALL中,单细胞转录组学显示胎儿ELP样特征共表达淋巴和髓系程序,而预后较好的NUTM1重排iALL定位于较晚的定向B细胞阶段。
胎儿前前B祖细胞是B谱系限制的,但具有胎儿特异性基因表达程序,包括干细胞和非B谱系基因。KMT2A-r原始细胞类似这种细胞状态,这些非B谱系/干细胞程序可能在LS期间上调。
白血病细胞的异质性在已建立的疾病中保留可塑性。约70%的B-ALL病例含有CD34⁺CD19⁺CD22⁺ B细胞祖细胞。这些细胞携带相同的诊断性遗传病变,在CD19导向治疗后数量增加,并可在NSG小鼠中传播白血病。因此,它们提供了疾病逃逸CD19导向治疗的途径。KMT2A-r iALL的单细胞多组学分析已识别出治疗抵抗的、干性样原始细胞和增加谱系可塑性,主要在6个月以下患者中,而PROM1/CD133⁺ KMT2A-r ALL原始细胞是增殖性、干性样组分,在异种移植中更具侵袭性。这些亚群可能产生转换的、抗原阴性白血病。
将89例B-ALL样本映射到正常人类B细胞发育图谱上,证明最容易偏离B谱系的亚型是:KMT2A-r、DUX4-r、ZNF384-r和BCR:ABL1阳性疾病。它们表现出MPP样状态,特征为保留髓系能力和CEBPA激活。从该分析得出的复合多能性评分与较差生存独立相关。因此,遗传病变和起源细胞最好被视为相互作用的决定因素:病变是必要的,但其谱系结局受其转化的细胞发育状态和所涉及的调控程序影响。
单细胞分析揭示了异质性成熟特征,包括未成熟(NFATC4高)群体和更分化的CEBPA/FLT3高群体。DUX4-r原始细胞常异常表达CD371、CD14、CD33和CD2,同时丢失B细胞标志物,反映单核细胞偏倚。机制上,截短的DUX4融合蛋白驱动异常转录和剪接,影响B细胞分化并促进髓系相关状态。免疫治疗前识别CD2⁺和CD371⁺ B-ALL亚型伴有早期单核细胞转换,提示在任何治疗压力之前诊断时就可能存在LS许可性细胞状态。
总之,这些证据表明,起源于更原始细胞(HSC/MPP、LMPP和ELP)的白血病比B谱系定向阶段的白血病更可能发生LS,因为这些细胞保留潜在髓系潜力。当这些祖细胞为胎儿起源时,祖细胞的个体发育阶段可能允许可塑性。必须强调,诊断时白血病的主要细胞状态与其起源细胞不同。例如,KMT2A-r iALL的ELP/前前B样特征可能反映下游B谱系祖细胞适应了更早的发育程序,或上游起源细胞的转录程序已进化至ELP/前前B状态。区分白血病起始细胞的特性与白血病细胞状态,并确定各自如何促进可塑性,仍有待在为此开发的人类胎儿模型中研究。
谱系重编程的转录和表观遗传机制
LS的分子机制涉及B细胞转录的下调和髓系转录的激活。这些过程由表观遗传重塑促进,包括染色质可及性、组蛋白修饰和增强子激活的改变,从而改变白血病细胞的调控网络和转录因子(TF)活性。
在正常造血中,B细胞身份由转录因子层级建立和维持,其中PAX5和EBF1尤为重要。这些因子通过激活B淋巴基因表达程序,同时抑制谱系不适当基因(包括与C/EBPα依赖性髓系生成和T细胞分化相关的基因)来维持B细胞身份。在CD19-CAR-T压力下,实验性删除PAX5或EBF1已被证明可在鼠模型中重现谱系重编程,证实这些因子在免疫治疗介导的选择下维持淋巴定向的必要性。
患者样本数据也暗示PAX5破坏在LS中的作用,PAX5改变被记录为KMT2A-r iALL的早期遗传事件,破坏B细胞身份稳定性,并在某些情况下被证明为随后的谱系转换启动克隆。在免疫治疗后发生LS的KMT2A野生型ALL中,全基因组测序的系统发育重建揭示了不同的突变序列,其中早期半合子PAX5缺失随后发生第二次打击导致双等位基因失活,先于白血病克隆向淋巴和髓系谱系的分化。相反,在某些病例中PAX5改变在复发时获得,表明TF丢失相对于治疗压力的时间在患者间是可变的。
LS的另一种机制基于髓系转录网络的激活,其中PU.1(由SPI1编码)、C/EBPα、C/EBPβ和RUNX1是关键。C/EBPα可物理置换B细胞特异性增强子上的PU.1,导致淋巴调控位点染色质关闭,同时激活巨噬细胞特异性增强子。C/EBPβ可将完全定向的B细胞重编程为保留自我更新能力的粒细胞-巨噬细胞祖细胞(GMP)样群体,证明髓系TF足以覆盖已建立的淋巴身份,且产生的重编程细胞可维持克隆扩增。这一过程的动力学也受表观遗传调控,因为CARM1介导的C/EBPα精氨酸甲基化调节谱系转换速率。
KMT2A-r ALL LS病例表现出染色质可及性的大规模变化、协调的转录和可变剪接重编程以及染色质重塑失调。特别重要的是染色质域解旋酶DNA结合蛋白4(CHD4)和核小体重塑及去乙酰化酶(NuRD)。单独扰动CHD4足以在白血病细胞中诱导髓系基因表达,确定该调控因子直接参与谱系身份的维持。特定基因重排通过相关表观遗传机制促进谱系模糊性。ZNF384-r反复在具有混合谱系特征的B-ALL中被识别,通过增强子重塑和TF网络失调起作用。PTEN-PU.1轴的改变进一步证明,染色质重构本身,独立于新的基因突变,可改变谱系潜能。
炎症和细胞因子介导的微环境
炎症和细胞因子介导的信号已被提出作为LS的潜在促成因素。白细胞介素-6(IL-6)诱导KMT2A::AFF1白血病细胞系不可逆的髓系分化,诱导CD33、CD13和CD11b。尽管细胞系中的这一观察不能确立微环境在体内对LS的贡献,但还有其他支持性证据。(i) MPP中的谱系命运决定:IL-6抑制B淋巴分化,同时在早期未定向HSC中有利于髓系输出。这种效应是可逆的。无IL-6时B淋巴祖细胞和CD19⁺ B细胞输出恢复,IL-6通过STAT3和ID1直接作用于多能祖细胞。同样原则延伸至恶性祖细胞。在鼠慢性髓系白血病模型中,IL-6将白血病MPP从淋巴系重定向至髓系,融合癌蛋白驱动IL-6表达。在人类KMT2A::MLLT3模型中,CD34⁺细胞与干细胞因子、IL-3、IL-6、Fms样酪氨酸激酶3配体和血小板生成素共培养,或暴露于提供SCF、GM-CSF和IL-3的体内微环境,影响白血病谱系结局。值得注意的是,其中一些细胞因子(GM-CSF、IL-3和IL-6)与CAR-T细胞治疗后的炎症环境重叠。(ii) B谱系向髓系转换:炎症信号还诱导促进LS的TF。感染相关细胞因子选择性上调祖细胞中的C/EBPβ。C/EBPα和C/EBPβ足以将B谱系细胞转换为巨噬细胞,淋巴祖细胞中的髓系增强子可能保留可被微环境信号激活的状态。通过TNF和核因子κB(NF-κB)的炎症信号可进一步诱导PU.1并促进髓系偏倚和表观遗传重编程。
总之,这些临床前数据提供了生物学合理性,即炎症/细胞因子介导的信号可影响多能祖细胞中的淋系-髓系谱系决定,然而将其与白血病LS联系起来的直接临床证据仍然稀少。Gardner等报道了一例KMT2A-r B-ALL患者发生严重CRS伴IL-6升高,随后出现髓系复发。Wölfl等人描述了贝林妥欧单抗治疗期间KMT2A‐r LS快速并伴有炎症反应,随后在治疗中止后自发逆转。然而,CAR-T细胞治疗后CRS的高患病率及其与CAR-T细胞扩增的密切关系反对CRS作为LS主要独立原因,后者仅发生于2.9%的CAR-T细胞治疗后患者。
因此,炎症和细胞因子介导的信号可能仅在易感多能性或谱系限制性白血病克隆中选择或调节谱系可塑性,而非独立启动LS。早期IL-6或IL-1抑制是否会降低KMT2A-r疾病中的LS发生率,或髓系-细胞因子条件是否促进人类KMT2A-r模型中的LS,仍有待确定。
讨论
本综述综合了目前最大的已发表儿童LS病例数据库,并整合了临床、基因组、单细胞和功能数据以理解儿童白血病的LS。
基于本文回顾的文献,LS主要发生于B-ALL至AML(70.1%),其次为T-ALL至AML(5.9%)、B-ALL至MPAL/ALAL(5.0%)和T-ALL至MPAL/ALAL(1.5%)。这些发现支持Project EVOLVE的报告,该项目目前是最大的国际多中心治疗相关LS队列,回顾性分析了所有年龄组(中位年龄11.9岁)接受抗原导向免疫治疗(主要为CD19或CD22靶向治疗)后的75例病例(B-ALL中CAR-T细胞48.6%、贝林妥欧单抗44.3%、奥加伊妥珠单抗5.7%)。与本综述相似,主要转换为AML,从而突显了髓系重编程。
与B-ALL至AML转换相反,T-ALL LS似乎由早期胸腺祖细胞的内在发育可塑性驱动。早期T细胞前体白血病保留干细胞相关和髓系转录程序,而关键T谱系定向调控因子的破坏,包括BCL11B和NOTCH1,允许髓系分化状态的复活。
此外,本文分析证实KMT2A-r是LS的主要易感因素,占报告病例的47.3%(图 3B)。值得注意的是,KMT2A-r白血病仅占UKALL2003儿童B-ALL队列2579例中的43例(1.67%)(图 3A),表明在报道的儿童LS病例中显著过度代表。其他细胞遗传学和分子改变也驱动LS;然而,ZNF384-r、DUX4-r、BCR:ABL1阳性和CD371阳性疾病中LS的机制基础尽管临床相关性日益增加,仍知之甚少。值得注意的是,在201例报道的LS病例中鉴定出6例(3.0%)PAX5 P80R,与未经选择的儿童B-ALL队列相比明显富集,包括UKALL2003中2579例的11例(0.4%)和AIEOP-BFM ALL 2000队列中1028例BCP-ALL的20例(1.9%)。鉴于PAX5在维持B细胞身份中的核心作用以及PAX5 P80R相关的B细胞分化受损,这种富集在生物学上是合理的。然而这些数据应谨慎解读,因为PAX5 P80R在较早的LS报告中未常规评估,且各研究分子检测差异很大,因此其真实患病率及与LS的关联仍有待在前瞻性表征的队列中确定。
尽管近期研究未将初诊时异常跨谱系抗原表达确定为LS的明确预测因子,但本综述中39.7%的病例观察到该现象,可能提示谱系可塑性,值得进一步研究。
贝林妥欧单抗后LS的发生率仍不明确。CAR-T细胞治疗后的发生率在各研究中差异很大,某些队列达到22%至29%,而其他队列显示持久缓解且谱系转换罕见。CD19丢失在CD19导向CAR-T细胞治疗后似乎比贝林妥欧单抗后更常见。
在纳入治疗特异性分析的患者中,治疗干预与LS之间的中位报告间隔为3.0个月,贝林妥欧单抗和CAR-T细胞治疗后至LS的时间与Project EVOLVE报告相似。总体而言,暴露于免疫治疗的患者似乎比单纯化疗患者更早发生LS(中位8.4个月)。
CD19或CD22导向免疫治疗后LS的快速发生强烈支持免疫逃逸机制。抗原导向治疗似乎并非诱导从头谱系重编程,而是选择性消除淋巴白血病群体,同时促进具有潜在髓系分化潜能的罕见预先存在亚克隆的扩增。在KMT2A-r等遗传可塑性白血病中,这种选择压力可能揭示休眠的髓系转录程序,而化疗相关LS可能反映克隆适应和渐进性谱系重塑的较慢过程。该模型得到以下报告的支持:LS在贝林妥欧单抗开始后数天内发生,以及某些KMT2A-r iALL病例在治疗停止后LS的可逆性。
总之,这些发现表明免疫治疗压力本身不足以驱动LS,而是作用于由内在白血病可塑性、发育状态和克隆异质性定义的许可性生物学环境。值得注意的是,同时靶向CD19/CD22可能通过消除过渡性CD22⁺白血病状态来限制LS逃逸。
在本综述中,20例LS患者中有13例(65.0%)在HSCT后达到长期缓解,提示巩固性移植可能支持成功的LS管理。这些发现与Project EVOLVE和其他报告一致,建议对免疫治疗后复发进行巩固性HSCT。针对LS的靶向治疗显示出可变结果。病例报告提示menin抑制剂在KMT2A-r白血病中的可变反应,而Project EVOLVE中接受menin抑制剂的6例患者未能达到完全缓解。重要的是,menin抑制剂治疗期间发生LS也有报道。相比之下,Oszer等报道了使用CAR-T细胞治疗联合索拉非尼成功治疗一例携带持续FLT3突变的患者,随后索拉非尼维持治疗。尽管结论受小样本量限制,这些观察表明靶向治疗可能有助于克服LS,特别是整合到移植后维持治疗中。
作者提出,发育上未成熟的白血病克隆可能起源于胎儿或出生后早期造血,且常以KMT2A-r为特征,保留具有多谱系潜力的转录状态,这种状态可能促进LS。抗原导向免疫治疗随后作为强选择性压力,消除B谱系定向亚克隆,同时保留或选择具有髓系潜力的细胞。免疫治疗产生的炎症微环境可能作为生物放大器,降低易感细胞中髓系转录程序的激活阈值。谱系转换随后通过B细胞TF网络下调(PAX5、EBF1)、表观遗传和染色质重塑(CHD4/NuRD、增强子重编程)以及髓系TF(PU.1、C/EBPα、C/EBPβ和RUNX1)的去抑制和激活来执行。这些关键点的总结见图6。
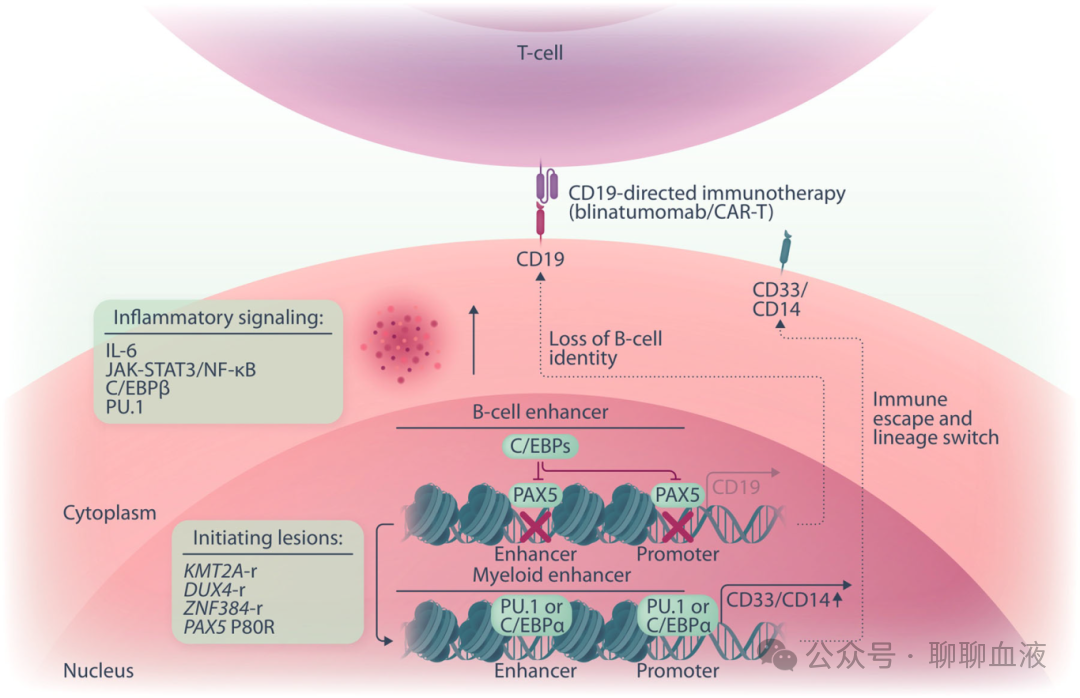
图6. B淋巴细胞白血病(B-ALL)谱系转换(LS)的拟定机制。粉色描述为 B-ALL原始细胞,紫色描述为 T细胞。启动病变(KMT2A‐r、DUX4‐r、ZNF384‐r和PAX5 P80R)和与 CD19导向免疫治疗相关的炎症信号增加:白细胞介素‐6(IL‐6)、JAK–STAT3和活化 B细胞的核因子κ-轻链增强子(NF‐κB)信号,诱导C/EBPβ和PU.1。在 B细胞状态下,PAX5结合 B系增强子和启动子元件,维持 B细胞基因(包括CD19)的表达。C/EBP因子在这些元件上抑制PAX5,从而减少 B系转录并沉默CD19(B细胞同一性丧失)。同时,PU。1和C/EBPα结合髓系增强子和启动子元件,激活髓系基因,包括 CD33和CD14。CD19导向的免疫治疗(贝林妥欧单抗或CAR‐T细胞)施加选择压力,有利于失去 CD19的细胞,允许免疫逃逸和 LS达到 CD33/CD14阳性髓系表型
结论与未来展望
总之,本文回顾的临床和生物学证据表明,谱系可塑性涵盖从谱系漂移(LD)到稳定混合表型状态再到伴AML转化的完全LS等一系列临床表现。但还有一些重要问题仍未解决。仍不清楚有多少LS源于预先存在的髓系能力克隆的选择,有多少源于B淋巴细胞的主动重编程。两种机制甚至可能同时发生。来自一例ALL至AML病例的全基因组系统发育数据支持从早期分化克隆的分支进化。相反,共享的IgH/TCR-β重排介于LS-AML和原始B-ALL之间,表明克隆淋巴起源。目前无法可靠地预测或预防LS,因此建议在贝林妥欧单抗和CAR-T细胞试验中加入前瞻性LS监测,以确定其真实发生率并识别有风险的患者。此类研究应包括扩展的标准化流式细胞术结合纵向基因组克隆追踪,并在选定的病例中进行单细胞测序,在治疗前后进行。应特别关注具有既定谱系可塑性的白血病,包括KMT2A-r、ZNF384-r、DUX4-r和PAX5 P80R B-ALL。扩展免疫表型分析,包括CD371作为DUX4-r B-ALL潜在替代标志物,可能有助于识别具有跨谱系特征的微小群体。
关键临床问题是LS能否在发生前被预测。前瞻性监测可以确定LS倾向克隆是否在抗原导向治疗前就已存在,以及它们在治疗压力下的扩增是否预示随后的LS。如果得到验证,这些群体可以为风险适应性监测和治疗决策提供信息。针对谱系可塑性的策略,包括表观遗传或menin导向的方法,应作为预防谱系转换的潜在手段进行探索。
参考文献
Hemasphere . 2026 Nov 4;10(11):e70528. doi: 10.1002/hem3.70528.